摘 要:为探索施磷水平与种植密度调控胡麻腋芽激素平衡、分枝性状和产量形成的内在关系,以陇亚10号为供试材料,采用二因素随机区组试验设计,设4个施磷(P2O5)水平(0、37.5、75、150kg·hm-2,分别记为P0、P1、P2、P3)和3个密度水平(525、750、975万粒·hm-2,分别记为D1、D2、D3),研究磷密耦合对胡麻腋芽生长素(IAA)和细胞分裂素(CTK)含量及其关键代谢酶活性的影响,分析分枝性状与产量形成的关系。结果表明,相同施磷水平下,D2处理色氨酸氨基转移酶(TAA)、黄素单加氧酶(FMO)、细胞分裂素氧化脱氢酶(CKX)活性及IAA含量较D1、D3降低5.19%~9.21%、3.67%~8.47%、1.51%~20.42%、1.73%~9.72%,异戊烯基转移酶(IPT)活性和CTK含量升高7.06%~19.30%和7.97%~15.04%;相同密度下,总分枝数和产量均以P2处理最优,较其他施磷水平分别增加8.65%~15.68%和2.95%~8.78%。D2P2组合较其余处理显著降低了腋芽IAA/CTK比值,下降幅度为10.77%~41.75%,胡麻籽粒产量提升了3.52%~11.97%。相关性分析表明,CTK含量与总分枝数呈极显著正相关,IAA/CTK比值与产量呈显著负相关。综上,75kg·hm-2的施磷水平与750万粒·hm-2的种植密度耦合,可通过调控胡麻腋芽激素代谢水平优化分枝性状,实现增产增效。本研究为西北旱区胡麻高产栽培提供了理论依据。
关键词:胡麻;施磷水平;种植密度;腋芽内源激素;分枝特性
油用亚麻(Linum usitatissimum L.)俗称胡麻,是我国重要的特色油料与经济作物[1],其籽粒富含α-亚麻酸、亚油酸、木酚素、膳食纤维等多种营养成分,在食品、保健、医药和饲料等领域应用广泛[2]。保障胡麻稳产高产,不仅能促进农业发展和农民增收,更能保障特色油料供给安全[3]。胡麻产量与有效蒴果数、分枝数、千粒重呈正相关[4],其中有效分枝数决定蒴果总数,是籽粒产量形成的关键性状,通过适宜栽培措施促进分枝发生并优化其发育,可显著提高有效蒴果数,进而促进增产[5]。因此,深入解析不同栽培条件下胡麻分枝性状及其调控机理,对优化株型、抗倒、增产至关重要。
作物分枝(分蘖)起源于腋生分生组织,历经腋芽起始与伸长两个阶段,受遗传、温度、光照及栽培措施等诸多因素影响[6],在各类栽培措施中,种植密度通过调控群体资源竞争,对分枝影响较为明显[7]。前人对不同作物的相关研究表明,随种植密度增加,油菜有效分枝数、单株角果数逐渐减少[8];花生单株分枝数、总果数随密度降低而增加[9];大豆分枝数和单株荚数在种植密度为18万株·hm-2时达到最多,更高密度则抑制分枝[10]。除密度外,施肥策略也是调控分枝的关键措施,合理的养分供给可优化群体结构、提升资源利用效率[11]。氮素已被证实显著影响苦荞[12]、紫花苜蓿和无芒雀麦[13]等作物的分枝与分蘖。随着研究的深入,前人发现磷肥在分枝形成和生物量积累中也发挥重要作用[14]。穴施P2O5 100kg·hm-2可优化辣椒生长,进而提高了生物量[15];与不施磷相比,施磷处理显著提高了油菜分枝高度和分枝数[16],以及红豆草的单株花序数和花序荚果数[17]。然而,密度与养分并非直接作用于腋芽,而是通过调控内源激素网络间接影响分枝[18]。在众多激素中,生长素(auxin,IAA)与细胞分裂素(cytokinin,CTK)的拮抗平衡被视为分枝发育的核心[19],较高CTK/IAA比值有利于火龙果花的花芽分化[20],亦能促进水稻分蘖芽萌发[21]。
综上所述,分枝发育与养分、密度密切相关,但目前关于胡麻在不同磷肥和密度下的分枝响应特征,尤其是二者如何通过IAA/CTK比值协同调控分枝进而影响产量的机理尚未见报道。为此,本研究通过设置不同磷肥与密度处理,解析胡麻腋芽中IAA/CTK动态变化、关键代谢酶活性及其与分枝形态的关系,旨在阐明磷肥和密度处理通过激素调控优化分枝特性、促进产量提升的内在机制,为西北旱区胡麻高产高效栽培提供理论依据。
1 材料与方法
1.1 试验区概况
本研究于2023年在定西市农业科学院西寨国家胡麻品种区域试验站(34°26´N、103°52´E)开展,试验区地处黄土丘陵沟壑区,平均海拔2050m,年均降雨量305.8mm,年平均气温8℃,年日照时数2476.6h,无霜期140d,属中温带半干旱地区。试验地为梯田,土壤属黄绵土,基本肥力为:有机质8.23g·kg-1,全氮0.84g·kg-1,全磷0.81g·kg-1,碱解氮49.32mg·kg-1,速效磷29.84mg·kg-1,速效钾115.9mg·kg-1,pH值8.11。
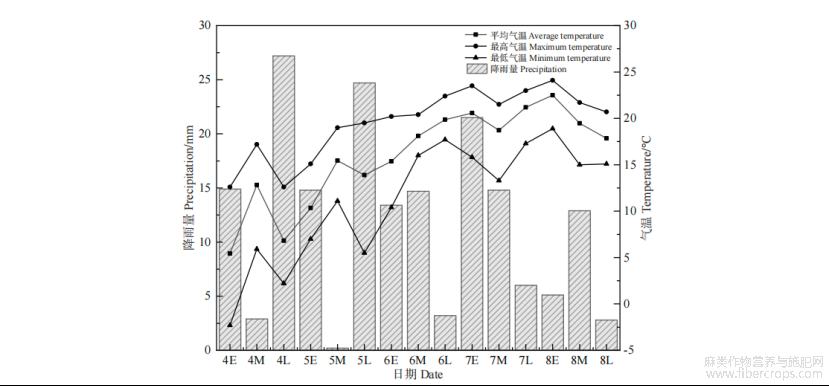
注:E:每月上旬;M:每月中旬;L:每月下旬。E、M、L前的数字表示月份。
图1 2023年胡麻生育期气温与降雨量
1.2 试验设计
本试验以甘肃省农业科学院作物研究所胡麻育种与资源中心提供的陇亚10号胡麻品种为供试材料,设置种植密度(D)和施磷水平(P)两个因素进行随机区组试验,种植密度设3个梯度(D1:525万粒·hm-2、D2:750
万粒·hm-2、D3:975万粒·hm-2);磷肥(P2O5)设4个水平(P0:0kg·hm-2、P1:37.5kg·hm-2、P2:75kg·hm-2、P3:150kg·hm-2),两因素组合共形成12个处理,每个处理设3次重复,共计36个小区。小区面积为12m(24m×3m),相邻小区间距30cm,区组间留50cm隔离带,播种深度为3cm,行距20cm。磷肥和氮肥分别为过磷酸钙(P2O516%)和尿素(N46%,120kg·hm-2),均作为基肥一次性施入。试验于2023年4月10日播种,8月13日收获,其余田间管理措施均参照当地常规大田生产。
1.3 测定项目与方法
于出苗后在各小区内选取约四分之一代表性区域,并从中挑选长势一致、农艺性状相似的50株胡麻挂牌标记,每日观察胡麻的生长动态,以子叶略变黄、叶腋处有新芽形成之日记为新芽形成后第1天(Day1),并于新芽形成后Day1、第7天(Day7)、第13天(Day13)分别对主茎上紧邻顶芽生长的第1个腋芽整体进行取样,采集的样品放入液氮速冻后,转移至-80℃冰箱中待测“1.3.1”“1.3.2”项指标。
1.3.1 胡麻腋芽中内源激素含量测定
生长素(IAA)和细胞分裂素(CTK)含量采用间接酶联免疫法(enzyme-linked immunosorbent assay,ELISA)进行测定。样品前处理如下:称取0.1g腋芽组织,先用0.05mol·L-1 Tris-HCl缓冲液(pH值7.4)配制的磷酸盐缓冲液(phosphate buffered saline,PBS)漂洗,吸水滤纸吸干表面水分后,加入0.9mL PBS,于冰浴中充分研磨成匀浆;随后4000r·min-1离心10min,收集上清液用于后续检测。检测基于双抗体夹心ELISA原理:在已包被捕获抗体的酶标板微孔中,分别加入样品提取液、系列标准品及辣根过氧化物酶(horseradish peroxidase,HRP)标记的检测抗体,37℃避光孵育60min,弃液后彻底洗涤。随后加入3,3´,5,5´-四甲基联苯胺(3,3´,5,5´-tetramethylbenzidine,TMB)显色底物,HRP催化TMB生成蓝色产物,反应一定时间后加入终止液使颜色由蓝转黄。溶液最终黄色深浅与样品中目标分析物浓度呈正比。使用Readmax 1900型酶标仪(上海闪谱生物科技有限公司),在450nm波长下测定各孔吸光度(optical density,OD)值,并依据标准曲线计算激素浓度[22]。
1.3.2 胡麻腋芽中内源激素代谢酶活性测定
细胞分裂素氧化脱氢酶(cytokinin oxidase/dehydrogenase,CKX)活性测定采用二氯酚靛酚(2,6-dichlorophenol indophenol,DCPIP)比色法[23]:取0.1g胡麻腋芽,加入0.4mL预冷提取缓冲液,冰浴研磨匀浆后,于4°C、12000×g离心20min,收集上清液。取0.1mL上清液加入含玉米素(zeatin,Z)及DCPIP等组分的3mL反应体系中,立即使用UV-756型分光光度计(上海仪器仪表有限公司)在600nm处监测吸光度变化(每5s记录一次,持续1min)。样品设3次重复,取平均值计算酶活性。此外,色氨酸氨基转移酶(tryptophan aminotransferase,TAA)、异戊烯基转移酶(isopentenyl transferase,IPT)和黄素单加氧酶(flavin monooxygenase,FMO)活性均采用ELISA试剂盒(江苏晶美生物科技有限公司,盐城)进行测定[24]。
1.3.3 胡麻分枝性状的测定
于胡麻成熟期,每小区采集长势相似、成熟一致的植株样品10株,分别测定分枝数、分枝角度。分枝数:从基部分枝开始,到末端的总分枝数目;分枝角度:使用量角器测量胡麻主茎与主茎一级分枝之间的夹角。
1.3.4 产量及其构成因子测定
于成熟期采用五点取样法,从各小区随机选取10株胡麻植株,经自然风干后进行考种,测定单株有效蒴果数、籽粒数及千粒重。待全田植株完全成熟后,按小区分别收获、脱粒,籽粒自然晾晒至含水量低于10%时,称量并记录各小区实际籽粒产量。
1.4 数据处理
采用 Microsoft Excel 2021整理数据,SPSS 26.0软件进行方差分析(analysis of variance,ANOVA),单因素和双因素差异显著性检验均采用最小差异法(least significant difference,LSD),使用 Origin 2021作图。数据均以“平均值±标准差”表示。
2 结果与分析
2.1 施磷水平和种植密度对胡麻产量及产量构成因子的影响
由表1可知,不同种植密度下,胡麻产量在施磷水平间均表现为P2>P1>P3>P0,D1、D2、D3密度下P2较P0、P1、P3水平平均显著增加了134.48、45.26、78.15kg·hm-2。各密度P2有效蒴果数、籽粒数、千粒重分别较其他施磷水平平均显著增加8.31%~23.34%、1.62%~3.51%、0.77%~1.28%。在密度水平间,各施磷水平下D2较D3水平有效蒴果数、千粒重、籽粒数平均显著提升13.14%、1.16%、3.05%;产量在密度水平间无显著差异。在不同施磷水平与种植密度下,D1、D2、D3水平下P2水平有效蒴果数、籽粒数、产量较P0分别提升了18.28%~26.58%、2.48%~4.84%、7.20%~10.99%,且均在D2P2处理达到最大;D2P2产量较最低处理D1P0增加11.97%。
2.2 施磷水平和种植密度对胡麻分枝特性的影响
由图2可知,同一种植密度下,随施磷水平的增加,分枝角度先降后升,总分枝数先升后降。各密度下P2较其他施磷水平分枝角度平均显著降低4.84%~12.24%;各密度P2总分枝数较P0、P1、P3水平显著增加8.65%~15.68%。同一磷肥水平下,随种植密度的增加,分枝角度持续缩小,高密度抑制分枝伸展,致使D3水平角度最小;总分枝数先升后降,于D2水平下达到峰值。各施磷水平下D3水平分枝角度较D1、D2处理平均显著降低4.39%、13.57%;各施磷水平D1、D2水平总分枝数较D3平均显著增加17.62%、20.03%。
表1 磷肥水平和种植密度对胡麻产量及产量构成因子的影响
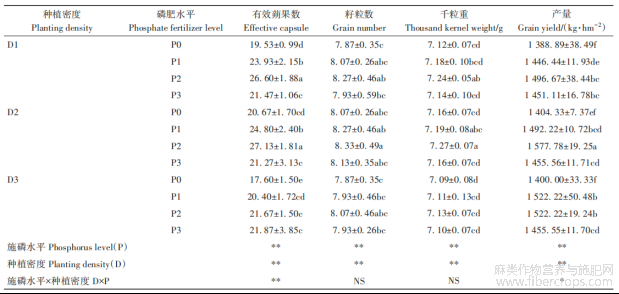
注:同列不同小写字母表示相同指标在不同处理间差异显著(P<0.05),*表示在P<0.05水平影响显著,**表示在P<0.01水平影响极显著,NS表示无显著影响。下同。
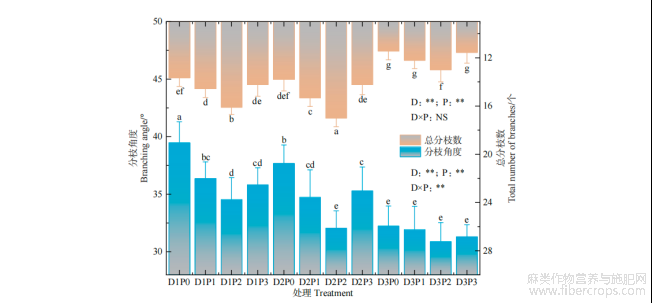
注:不同小写字母表示处理间差异显著(P<0.05)。下同。
图2 磷肥水平和种植密度对胡麻分枝形态的影响
在不同施磷水平与种植密度下,D2处理下P2水平总分枝数较其他磷肥水平增加9.82%~18.94%;D2水平下,P2较P0水平分枝角度降低了14.95%。综上,D2P2处理能兼顾通风透光与分枝发展潜力。
2.3 施磷水平和种植密度对胡麻腋芽IAA含量及其代谢酶活性的影响
2.3.1 施磷水平和种植密度对胡麻腋芽IAA含量的影响
由图3可知,随胡麻生长发育阶段的推进,IAA含量呈先降后升趋势。不同施磷水平间IAA含量表现为P0>P3>P1>P2。新芽形成后第1天(Day1)和第7天(Day7),各密度P2水平IAA含量较其他施磷水平平均显著降低6.21%~17.28%和6.62%~12.55%;新芽形成后第13天(Day13),各密度P2较P0、P3水平平均显著降低13.92%、7.24%。不同种植密度下,IAA含量呈现D1>D3>D2,新芽形成后第一天(Day1)和第7天(Day7),各施磷水平D2处理IAA含量较D1、D3平均显著降低9.72%、5.17%和7.45%、4.27%;新芽形成后第13天(Day13),各施磷水平D2较D1平均显著降低7.78%。不同施磷水平与种植密度下,新芽形成后第1天(Day1)~第13天(Day13),IAA含量均以D2P2最低,较最高处理D1P0分别降低了25.14%、19.93%和20.94%。
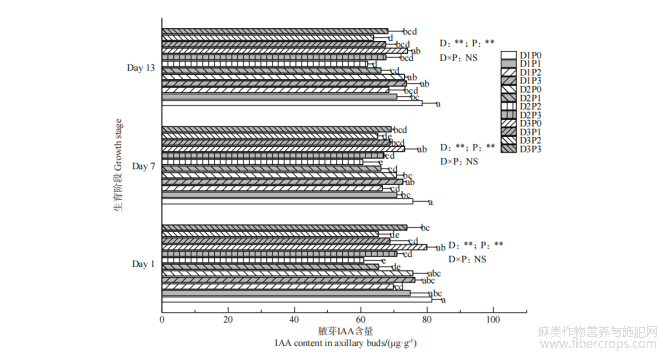
注:同一生育阶段下,不同小写字母代表处理间差异显著(P<0.05)。下同。
图3 磷肥水平和种植密度对胡麻腋芽IAA含量的影响
2.3.2 施磷水平和种植密度对胡麻腋芽TAA活性的影响
由图4-A可知,随生育时期推进,腋芽色氨酸氨基转移酶(TAA)活性呈升高趋势。新芽形成后第1天(Day1)~第13天(Day13),D1、D2、D3密度下P2较其他施磷水平平均降低2.45%~6.74%、3.49%~7.48%、3.69%~8.18%。TAA活性表现为D1>D3>D2,三个阶段中,D2水平较D1、D3分别平均降低9.21%、6.76%,8.82%、6.36%,6.90%、5.19%。在不同施磷水平与种植密度下,新芽形成后第7天(Day7)交互作用显著,D2P2处理腋芽TAA活性最低,较其他处理降低2.79%~14.91%。
2.3.3 施磷水平和种植密度对胡麻腋芽FMO活性的影响
如图4-B所示,随生育时期推进,黄素单加氧酶(FMO)活性先降低后升高。随施磷水平增加,FMO活性先降后升,三个阶段,P2较P1、P3处理平均降低6.52%、13.20%,4.66%、8.24%,5.75%、9.35%。FMO活性随种植密度变化表现为D1>D3>D2,新芽形成后第1天(Day1)~第13天(Day13),D2较D1、D3水平平均降低8.47%、5.50%,6.53%、4.03%,4.69%、3.67%。施磷水平与种植密度交互作用对三个生育阶段FMO活性均无显著影响,但各阶段FMO活性均在D2P2下降至最低,较最高活性处理D1P0分别降低了20.96%、15.77%、18.15%。
2.4 施磷水平和种植密度对胡麻腋芽CTK含量及其代谢酶活性的影响
2.4.1 施磷水平和种植密度对胡麻腋芽CTK含量的影响
由图5可知,CTK含量随生育阶段推进呈现先升高后降低趋势。不同施磷水平下,三个阶段,各密度下P2水平CTK含量较其他施磷水平平均显著增加6.32%~11.05%、7.90%~11.90%和5.61%~11.98%。CTK含量在不同种植密度间表现为D2>D1>D3。新芽
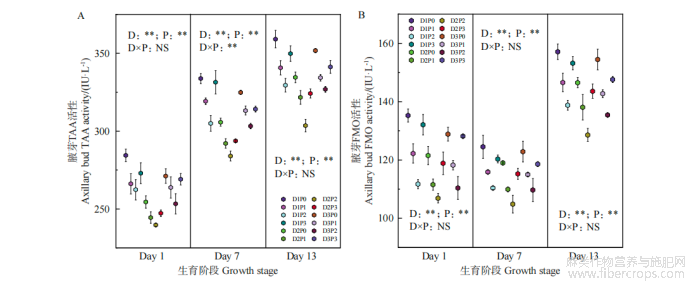
图4 磷肥水平和种植密度对胡麻腋芽IAA关键合成酶活性的影响
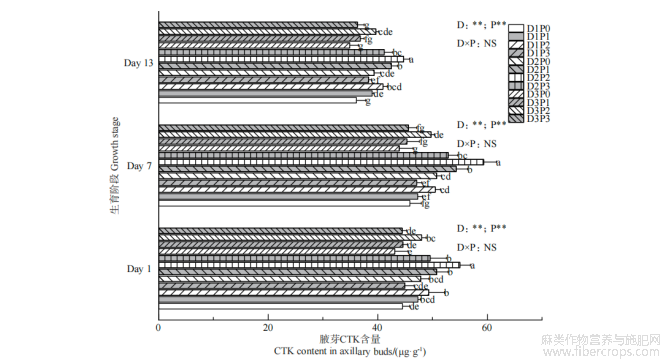
图5 磷肥水平和种植密度对胡麻腋芽CTK含量的影响
形成后第1天(Day1)~第13天(Day13),D2水平CTK含量较D1、D3分别平均显著提升8.39%、11.32%,12.19%、15.04%,7.97%、11.97%。施磷水平与种植密度在三个阶段的交互作用均不显著,但各阶段CTK含量均在D2P2达到最高,较其他处理分别增加7.70%~21.61%、8.46%~25.96%、4.99%~22.01%。
2.4.2 施磷水平和种植密度对胡麻腋芽IPT活性的影响
由图6-A可知,异戊烯基转移酶(IPT)活性随生育时期推进总体呈升高趋势。IPT活性随施磷水平变化呈现为P2>P1>P3>P0,三个生育阶段,P2较P1、P3水平均值显著提高6.52%、10.77%,7.20%、12.46%,7.76%、9.64%。不同种植密度间IPT活性表现为D2>D1>D3,在新芽形成后第1天(Day1)~第13天(Day13),D2水平IPT活性均值较D1、D3分别高出7.06%、17.14%,15.34%、19.30%,12.27%、18.78%。在不同施磷水平与种植密度下,三个阶段各处理中D2P2组合下IPT活性最高,较最低活性处理D3P0分别提升29.80%、31.33%、30.92%。
2.4.3 施磷水平和种植密度对胡麻腋芽CKX活性的影响
由图6-B可知,随着生育阶段的推进,细胞分裂素氧化脱氢酶(CKX)活性呈先降后升趋势。不同施磷水平间CKX活性表现为P2<P1<P3<P0,三个阶段下,不同密度P2较P3水平CKX活性平均降低9.14%、10.77%、6.06%。不同种植密度下,CKX活性表现为D3>D1>D2。新芽形成后第1天(Day1)~第13天(Day13),各施磷处理D2水平CKX活性较D3平均显著降低20.42%、19.22%、9.32%。不同施磷水平与种植密度交互作用不显著,但各阶段D2P2处理的CKX活性均降至最低,分别较活性最高处理D3P0降低了29.14%、31.93%和18.75%。
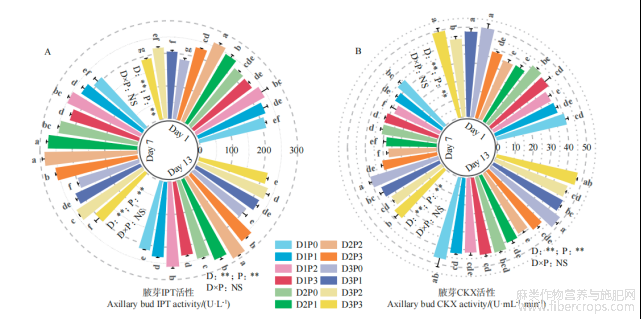
图6 磷肥水平和种植密度对胡麻腋芽CTK代谢酶活性的影响
2.5 施磷水平和种植密度对胡麻腋芽IAA/CTK比值的影响
由图7可知,随施磷水平增加,IAA/CTK比值表现为先降低后升高趋势。三个阶段,各密度P2水平IAA/CTK比值较P0、P1、P3水平平均显著降低12.50%~26.78%、13.84%~22.58%和10.35%~24.25%。IAA/CTK比值在不同种植密度下总体表现为D1>D3>D2,新芽形成后第1天(Day1)~第13天(Day13),D2水平IAA/CTK比值较D1、D3显著降低17.47%、16.08%,18.44%、18.46%,15.03%、13.48%。在不同施磷水平与种植密度下,三个阶段IAA/CTK比值均在D2P2处理下达到最低,较其他处理分别降低16.06%~41.75%、15.96%~38.62%、10.77%~36.16%。
2.6 胡麻内源激素与分枝性状及产量的相关性分析
由图8可知,IAA/CTK与总分枝数显著负相关,与分枝角度呈正相关,与产量极显著负相关;分枝角度与产量显著负相关,总分枝数与产量正相关;TAA、FMO活性与IAA含量极显著正相关,IPT活性与CTK含量极显著正相关,与CKX活性极显著负相关;IAA含量与IAA/CTK极显著正相关,CTK含量与IAA/CTK极显著负相关。综上,通过农艺措施下调IAA合成酶(TAA、FMO)活性以抑制IAA含量积累,同时上调CTK合成酶(IPT)活性并抑制其降解酶(CKX)活性以提升CTK含量水平,有效降低了腋芽IAA/CTK比值,进而推动胡麻总分枝数的增加和分枝角度的缩减,最终实现了产量的提升。
3 讨论
3.1 施磷水平与种植密度对IAA和CTK含量及其代谢酶活性的调控
磷是植物能量代谢与信号转导的核心元素,其供应水平直接影响IAA和CTK的合成代谢[25]。不同作物、器官激素对磷响应存在差异。施磷可提高玉米籽粒中生长素含量[26];而在强耐低磷水稻根系中,低磷胁迫显著增加IAA含量、降低Z和玉米素核苷(zeatin riboside,ZR)含量[27]。本研究中,IAA含量与其关键合成酶TAA和FMO活性变化趋势一致,不同密度下随施磷水平变化均表现为P0>P3>P1>P2;相反,CTK含量受其合成酶IPT的正向调控及分解代谢酶CKX的负向调控,其中,IPT活性与CTK含量均在P2水平达到峰值,而CKX活性则在P2处于较低水平。这可能是施磷水平影响相关基因表达,如正常供磷显著下调了莫松竹分蘖芽生长素合成基因YUC9与输出载体基因PIN1表达,同时抑制细胞分裂素氧化酶基因CKX9的转录水平,从而实现CTK的高效积累[28]。在种植密度梯度下,激素代谢呈非线性响应,不同施磷水平TAA、FMO、CKX活性及IAA含量随种植密度增加均先降后升,而IPT活性与CTK含量在D2水平达到最高,表明中等密度更利于提升CTK含量、降低IAA含量。高密度则通过促进顶端优势,上调主茎GhYUC5表达和IAA含量,且因郁蔽引发避荫反应,下调GhPIN1表达,降低IAA极性运输,同时下调腋芽GhIPT3基因表达,减少CTK合成,从而抑制营养分枝端腋芽萌发[29]。资源竞争加剧是高密度导致激素失衡的主因,而中等密度可有效缓解此问题,维持激素稳态。综上,D2P2处理通过协同调控,抑制IAA合成、促进CTK积累,为胡麻腋芽萌发创造了有利激素环境。
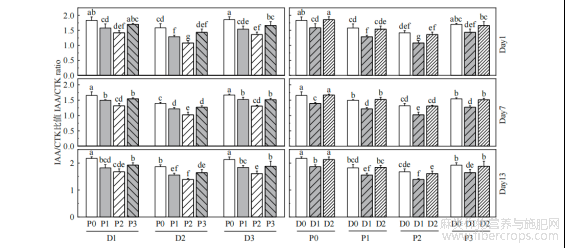
图7 磷肥水平和种植密度对胡麻腋芽IAA/CTK比值的影响
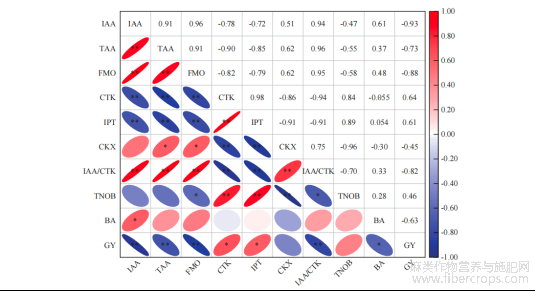
注:IAA:生长素;TAA:色氨酸氨基转移酶;FMO:黄素单加氧酶;CTK:细胞分裂素;IPT:异戊烯基转移酶;CKX:细胞分裂素氧化脱氢酶;IAA/CTK:生长素/细胞分裂素;TNOB:总分枝数;BA:分枝角度;GY:籽粒产量。*和**分别表示相关性达到显著(P<0.05)和极显著(P<0.01)水平。
图8 胡麻腋芽激素含量、关键酶活性与分枝特性及产量之间的相关性分析
3.2 激素响应与胡麻分枝性状的关系
植物分枝调控高度依赖于激素间的相互作用,其中IAA与CTK的拮抗平衡是核心作用[19]。研究表明,IAA/ZR比值越低,狗牙根分蘖数越多,反之则减少[30];青稞有效分蘖数随Z/IAA比值升高而增加[11]。本研究中,IAA/CTK比值随施磷量增加先降后升,总分枝数先增后减,与水葫芦分枝受激素调控的结果相似[31]。同一磷肥水平下,IAA/CTK比值总体表现为D1>D3>D2,D2水平下分枝数最多,即适度密植可优化群体资源分配,维持利于分枝的激素平衡;过高密度则因光、养分竞争加剧而使分枝受限,这与秘雅迪等[32]有关密度增加使生长素/脱落酸(abscisic acid,ABA)、ZR/ABA等比值上升及花芽分化减缓的结论相呼应。本研究还发现,TAA、FMO、CKX活性与总分枝数负相关,与分枝角度正相关,IPT活性与总分枝数负相关,IAA/CTK与总分枝数显著负相关,与分枝角度正相关(图8);在D2P2处理下,IPT活性最高,TAA、FMO、CKX活性最低,CTK积累最多、IAA积累最少,为腋芽萌发创造了有利的激素环境,实现了较多分枝数与适宜分枝角度。此外,近年研究表明,独脚金内酯(strigo lactone,SL)能通过抑制生长素运输限制分枝,而适量供磷可降低SL水平,间接解除分枝抑制[33]。因此,D2P2处理的分枝优势可能不仅源于IAA/CTK比值降低,还受到SL的协同调控。后续研究可通过测定SL含量或相关基因表达加以验证。
3.3 施磷水平与种植密度对胡麻分枝性状及产量形成的调控
分枝数量与角度直接影响冠层通风透光性,进而调控光合产物合成及其向各器官的分配,是连接个体发育与产量形成的关键纽带[18]。本研究不同种植密度下,随施磷水平增加,总分枝数先增后减,分枝角度先减后增,有效硕果数、籽粒数、千粒重、产量亦表现为先增后减,均在P2水平达到峰值,产量较其他水平提升2.95%~8.87%,这与高小丽[34]关于施磷对豌豆产量及构成因素影响研究的趋势相似,充足的分枝为蒴果提供了着生点位,实现了资源利用与经济产量同步上升。种植密度通过改变群体环境发挥作用,随着种植密度增加,植株间郁蔽加剧,触发避荫反应,促进主茎伸长、减少分枝形成以争夺光照[35];本研究中,不同施磷水平下总分枝数随密度增加呈先升后降趋势,分枝角度持续减小;D2水平分枝数量充足、角度适中,冠层疏密得当,既避免稀植的光能浪费,又缓解密植引发的个体竞争胁迫,产量达1482.47kg·hm-2,较D1和D3平均增产2.48%和0.50%,印证了适度密植在协调个体与群体关系中的关键作用,与前人关于胡麻密度过高显著降低分枝数和分枝长度的结果相符[36]。D2P2处理IAA/CTK比值最低,分枝性状较优,有效蒴果数、籽粒数、千粒重同步达峰,最终产量达1577.78kg·hm-2,较其他处理提高3.52%~11.97%。综上所述,胡麻高产并非单一因子极值所致,而是激素稳态、分枝形态与资源利用集成的结果。
4 结论
本研究结果表明,不同施磷水平与种植密度可通过调控胡麻腋芽中IAA与CTK的代谢平衡,显著影响分枝性状与产量形成,CTK含量与总分枝数呈极显著正相关,IAA/CTK比值与产量呈显著负相关。750万粒·hm-2种植密度通过抑制TAA、FMO活性、CKX含量,提高IPT活性,从而降低IAA含量、促进CTK含量积累;75kgP2O5·hm-2施磷水平有助于提升腋芽CTK含量及其合成酶活性,显著促进了分枝形成;75kgP2O5·hm-2施磷水平与750万粒·hm-2种植密度组合可有效降低IAA/CTK比值,缓解顶端优势,促进腋芽萌发,优化分枝性状,最终使群体产量达到1577.78kg·hm-2,较其他处理增产55.56~188.89kg·hm-2。
参考文献
[1]王瑞珺,吴兵,高玉红,等.施硅量和播种方式对胡麻养分积累及分配规律的影响[J].中国油料作物学报,2025,47(2):478-487
[2]赖玉萍,姜福全,黄思苑,等.亚麻籽油的营养成分、功能活性及应用研究进展[J].中国油脂,2022,47(8):109-115
[3]施文华,严茂林,刘昌勇,等.我国油料进口贸易的结构特征及对策分析[J].中国油脂,2023,48(8):1-8
[4]王海娣,张勇,高玉红,等.胡麻籽粒产量及相关农艺性状对多元化轮作模式的响应[J].草业学报,2022,31(12):52-65
[5]Zhang N,Liu Y H,Gui S T,et al.Regulation of tillering and panicle branching in rice and wheat[J].Journal of Genetics and Genomics,2025,52(7):869-886
[6]Liu P,Yin B Z,Liu X J,et al.Optimizing plant spatial competition can change phytohormone content and promote tillering,thereby improving wheat yield[J].Frontiers in Plant Science,2023,14:1147711
[7]Brown A,Soutor M,Ellison S.Impact of plant density on stem diameter,plant height,and branching in hemp (Cannabis sativa L.)[J].Agrosystems,Geosciences and Environment,2025,8(2):e70126
[8]李建永,陈晓艳,刘翠翠,等.不同种植密度对洱海流域直播油菜主要农艺性状及产量的影响[J].耕作与栽培,2025,45(9):66-69
[9]殷君华,邓丽,苗建利,等.播期和密度对小果型彩色鲜食高油酸花生农艺性状和产量的影响[J].山东农业科学,2025,57(5):75-80
[10]陈琦坤.不同种植密度对大豆农艺性状及产量的影响试验[J].种子科技,2025,43(17):38-40
[11]郭案铭,吴昆仑,姚晓华,等.不同种植密度与施肥量对青稞分蘖动态及群体结构的影响[J].西北农业学报,2024,33(9):1659-1666
[12]张晋,闫志明,张丽君,等.氮水平对苦荞生长发育及氮素吸收利用的影响[J].核农学报,2024,38(11):2219-2227
[13]王召明,陈翔,赵杰,等.生物炭与氮肥配施对豆禾间作系统农艺性状和品质的影响[J].草地学报,2025,33(6):1982-1990
[14]Feng Y Y,He J,Turner N C,et al.Phosphorus supply increases internode length and leaf characteristics,and increases dry matter accumulation and seed yield in soybean under water deficit[J].Agronomy,2021,11(5):930
[15]崔玉涛,李顺晋,王媛,等.磷肥施用量和方式对辣椒产量及磷素吸收利用的影响[J].植物营养与肥料学报,2023,29(12):2322-2331
[16]秦梦倩,宁宁,程泰,等.磷肥用量对迟播油菜产量形成及磷肥利用效率的影响[J].作物学报,2025,51(12):3304-3316
[17]杨浩,耿小丽,武慧娟,等.磷肥对甘肃临夏地区红豆草种子生产及土壤养分的影响[J].草业科学,2023,40(3):779-785
[18]周希萌,付春,马长乐,等.作物分枝的分子调控研究进展[J].生物技术通报,2021,37(3):107-114
[19]Yuan Y D,Khourchi S,Li S J,et al.Unlocking the multifaceted mechanisms of bud outgrowth:Advances in understanding shoot branching[J].Plants,2023,12(20):3628
[20]张瀚,杨福孙,胡文斌,等.火龙果生长发育过程中内源激素含量变化[J].江苏农业科学,2022,50(10):110-116
[21]罗宝杰,许俊旭,丁艳锋,等.内源CTK和IAA平衡对水稻分蘖芽休眠与萌发的影响[J].作物学报,2014,40(9):1619-1628
[22]赵宏丽,孙海洲,李金霞,等.精氨酸及N-氨甲酰谷氨酸对断奶羔羊肠道免疫力的影响[J].中国草食动物科学,2012,32(S1):348-351
[23]杨万年,张秀红,熊永华,等.2,4-D和激动素对烟草愈伤组织IAA氧化酶和细胞分裂素氧化酶活性的影响[J].植物生理学通讯,2003,53(6):589-591
[24]谭玉荣,陈东亮,杨守臻,等.大豆抗豆卷叶螟GmKTI1-like的功能研究[J].生物技术通报,2025,41(6):99-108
[25]Rico-Resendiz F,Diaz-Santana Z H U,Dipp-Alvare M,et al.Phosphate starvation triggers transcriptional changes in the biosynthesis and signaling pathways of phytohormones in Marchantia polymorpha[J].Biology and Life Sciences Forum,2021,4(1):89
[26]郭丽,王丽英,史建硕,等.滴灌下不同施磷量对夏玉米内源激素及子粒灌浆特征的影响[J].玉米科学,2022,30(1):93-99
[27]徐月梅,彭诗燕,孙志伟,等.不同耐低磷水稻品种的内源激素水平差异及其与产量和磷利用率的关系[J].中国水稻科学,2025,39(2):231-244
[28]Lin C J,Hang T T,Jiang C H,et al.Effects of different phosphorus levels on tiller bud development in hydroponic Phyllostachys edulisseedlings[J].Tree Physiology,2023,43(8):1416-1431
[29]Li T,Zhang Y J,Dai J L,et al.High plant density inhibits vegetative branching in cotton by altering hormone contents and photosynthetic production[J].Field Crops Research,2019,230:121-131
[30]张海燕,孙雪,于辉,等.赤霉素和细胞分裂素对狗牙根分蘖的影响[J].中国草地学报,2023,45(10):46-57
[31]牛佳,张黎明,金小萍,等.不同氮、磷营养水平下水葫芦体内生长素和细胞分裂素变化及与其分蘖关系的研究[J].苏州大学学报(自然科学版),2012,28(1):76-82
[32]秘雅迪,李慧,冯海平,等.土壤含水量和密度对棉苗花芽分化的调控效应及其生理学机制[J].中国生态农业学报(中英文),2021,29(7):1185-1193
[33]Barbier F,Fichtner F,Beveridge C.The strigolactone pathway plays a crucial role in integrating metabolic and nutritional signals in plants[J].Nature Plants,2023,9(8):1191-1200
[34]高小丽.施磷对豌豆产量及其构成因素的影响[J].作物杂志,2016,32(1):125-128
[35]Yu K M J,McKinley B,Rooney W L,et al.High planting density induces the expression of GA3-oxidase in leaves and GA mediated stem elongation in bioenergy sorghum[J].Scientific Reports,2021,11:46
[36]郑彩霞,赵宝勰,俞华林,等.沿黄灌区不同种植密度对胡麻产量和植株性状的效应[J].寒旱农业科学,2024,3(9):839-842
文章摘自:席志杰,贾玲玲,相石磊,等.不同施磷水平和种植密度对胡麻激素响应特征及分枝形成的影响[J].核农学报,2026,40(10):2070-2081.
