摘 要:为解析乙烯利对工业大麻大麻二酚(CBD)等大麻素合成积累的调控机制并挖掘候选基因,以工业大麻DMG245为材料,采用KASP分子标记在苗期筛选纯雌株,于始花期进行0、100、200μmol/L乙烯利处理,测定不同时期花叶CBD含量、单株花叶生物量及单株CBD产量,并对第2、4、6次处理后的花头进行有参转录组测序,结合差异表达基因(DEGs)富集分析与qPCR验证,重点解析萜类/大麻素合成途径、植物激素信号转导途径及转录因子的响应。结果表明:KASP鉴定雌株的花期符合率为98.1%;乙烯利处理提高了花叶CBD含量,以200μmol/L处理更为明显,且处理组单株CBD产量高于对照,实现了在不降低产量前提下花叶CBD含量与单株CBD总产量的同步提高。转录组共检测到4729个DEGs,200μmol/L处理组多于100μmol/L处理组、处理初期多于中后期;萜类合成相关基因受乙烯利诱导上调,大麻素合成关键基因CBGAS(LOC115713205)上调约4倍,CBDAS(LOC115697762)显著上调;植物激素信号转导途径富集到96个DEGs,共注释到248个转录因子基因,涉及AP2/ERF、MYB、bHLH、MYC、TIFY、WRKY等家族,其中ERF5与CsMYB1表达趋势一致,推测二者可能协同参与CBD合成的转录调控。研究旨在为阐明乙烯调控大麻素合成的分子机理及通过施用乙烯利提高工业大麻CBD含量与产量提供理论依据和基因资源。
关键词:工业大麻;乙烯利;转录组;CBD
乙烯作为一种气态植物激素,在调控植物的生长、发育、抵御外界侵扰以及合成次级代谢物质方面发挥着重要作用[1]。由于商业需求,在农业生产中人们特别关注那些具有特定功能的次级代谢过程。植物物质代谢是在多种外部和内部因素的调控作用下,经历一系列复杂的生理和生化过程,最终产生多样的次生代谢产物。
当植物遭受外界胁迫时,乙烯的生成会被激活,进而对次级代谢过程产生重要影响[2],因而乙烯也被广泛运用于植物产品催熟、品质调控及采后贮藏等。乙烯作为重要的植物激素之一,其信号传导在植物体内起着至关重要的作用,尤其是在调控植物次生代谢产物方面。Xu等[3]研究发现,外源性褪黑素可通过乙烯信号增加葡萄浆果内源性褪黑素含量,并增强葡萄中花青素、白藜芦醇、类黄酮等物质的积累,使乙烯参与葡萄浆果多酚物质代谢的调节。
大麻作为最古老的驯化作物之一,具有悠久的药用、工业、娱乐和农业用途[4-5],工业大麻也称为汉麻、火麻,是指四氢大麻酚(THC)含量低于0.3%的大麻类型。工业大麻特有的大麻二酚(CBD)具有抗炎、镇痛、抗痉挛等多种功效,在医药、美容、保健、食品等领域具有广泛的应用前景[6]。
研究发现,乙烯利施用浓度变化对开花期大麻雌株花叶中的THC、CBD、叶绿素、类胡萝卜素、α-生育酚、萜类化合物等的含量具有显著调控作用,合理施用乙烯利可以作为田间种植工业大麻中提高CBD和萜类化合物含量的有效途径[7]。乙烯是一种重要的植物激素,对调节工业大麻生长和发育有不可忽略的影响,故很有必要开展乙烯对CBD等大麻素合成的调控研究。本研究首先用KASP基因分型方法筛选出工业大麻DMG245的雌株,待雌株进入花期,进行乙烯处理,探究乙烯对其CBD含量的影响,并利用有参转录组测序技术分析100、200μmol/L浓度乙烯利处理后的花头转录组变化,通过基因差异表达挖掘乙烯调控大麻素合成的关键基因,旨在为进一步了解大麻素合成机理及栽培过程中施用乙烯利提高工业大麻CBD含量打下基础。
1 材料与方法
1.1 试验材料
已知雌雄的DMG245工业大麻植株及DMG245的种子,由中国农业科学院麻类研究所种质资源研究室提供。
1.2 主要试剂
FLU-ARMS for KASP 2×PCR Mix,乙烯利(索莱宝),2×CTAB,β-巯基乙醇,无水乙醇,DNA提取液,醋酸钠。
1.3 工业大麻性别鉴定
首先根据已经鉴定的工业大麻上有关性别连锁的SNP位点[8],设计KASP分子标记的引物,引物序列如下:
上游分型引物F1:GAAGGTGACCAAGTTCATGCTAGCTTGAAATGAGATGTCAAACC
上游分型引物F2:GAAGGTCGGAGTCAACGGATTGAGCTTGAAATGAGATGTCAAACT
下游通用引物R:GCAGCAGACCTGGGCATATAG
首先以已知性别的工业大麻样本提取叶片DNA进行KASP分型,验证引物的适用性;反应结束后利用CFX OPUS软件导出等位基因分型图,结果发现该对引物分型清晰、稳定性好,可用于DMG245的性别鉴定。随后提取DMG245种子萌发后的幼苗叶片DNA,采用该对引物进行性别鉴定,筛选出雌株。
1.4 乙烯利喷施处理
对筛选出的DMG245雌株加强水肥管理,以促进营养生长,待植株完成营养生长后,调节光照条件诱导其进入花期。
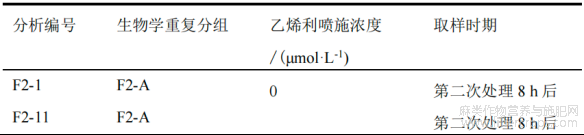
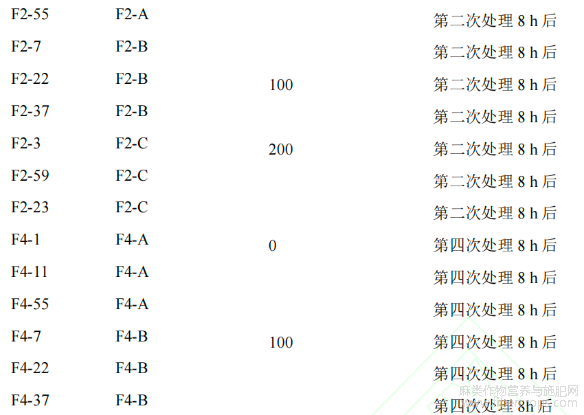
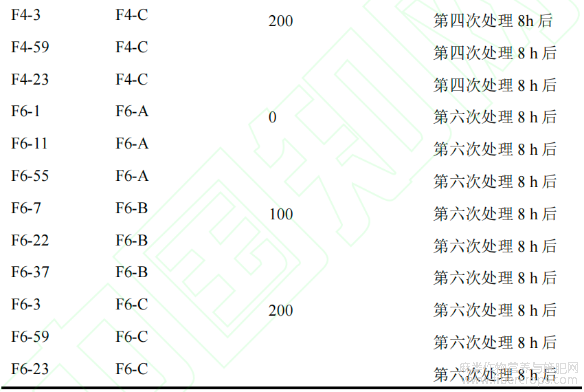
在雌株进入始花期2周后分别喷施100、200μmol/L的乙烯利,均匀喷至叶面湿润开始滴水,对照喷施等量蒸馏水,间隔2d,喷施6次,分别在第二次、第四次、第六次喷施8h后取花头,液氮速冻后保存至-80℃超低温冰箱待送测序。将待送测序样品分别标记装袋,每个样品3个生物学重复,共9组样品,送至生物公司利用Illumina平台进行转录组测序,样品详细信息见表1。分别在开花后2周(未处理时)、第1次处理后24h、第3次处理后24h、第6次处理后24h取顶端15cm花头混合后做后续CBD含量检测。
表1 工业大麻花测序样品信息表
2 结果与分析
2.1 工业大麻性别鉴定
工业大麻为雌雄异株植物,雄株花粉扩散能力强,雌株一旦授粉其花头CBD含量会明显下降。为避免外来花粉干扰,确保乙烯利处理在未授粉的纯雌株群体中进行,本试验全程在温室内开展,并在苗期采用KASP分子标记进行性别鉴定,仅保留雌株,淘汰雄株。对120株幼苗的KASP分型结果显示,雌株56株、雄株58株、未确定株6株(图1a)。其中KASP预测的56株雌株有54株成活至开花期,经花期形态学鉴定,53株确认为雌花,符合率达98.1%(53/54,图1b),与苗期分子分型及前期筛选结果一致,表明KASP鉴定准确可靠,可作为本研究纯雌株群体构建的有效质控手段。从鉴定为雌株且开花期长势一致的植株中选取材料,按乙烯利浓度分为0、100、200μmol/L3组进行喷施处理。
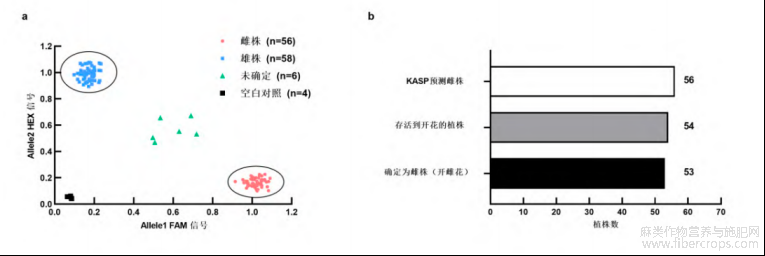
注:(a)KASP等位基因分型散点图:120株苗经分型聚为雌株(n=56)、雄株(n=58)、未确定株(n=6)及空白对照NTC(n=4),椭圆示意雌、雄类群;(b)56株KASP预测雌株中54株成活至开花、53株确认具雌花,符合率53/54=98.1%。
图1 KASP标记对工业大麻DMG245的雌雄鉴定及雌株表型验证
2.2 乙烯利处理后 CBD 含量测定
对0、100、200μmol/L共3组乙烯利处理的工业大麻,分别于花后14、16、20、26d取样测定花头CBD含量,结果如图2所示。乙烯利处理后花头CBD含量均高于对照,且200μmol/L处理组高于100μmol/L处理组(图2a、2c)。在CBD含量提高的同时,乙烯利处理还促进了花序生物量的积累:对照单株花叶生物量为0.76kg,100、200μmol/L处理组分别为0.81、0.84kg(图2b),处理组均高于对照,但各处理间差异未达显著水平。进一步以单株花叶生物量与CBD含量计算单株CBD产量(图2d),结果表明,乙烯利处理在提高CBD含量的同时并未降低产量,以200μmol/L处理组单株CBD产量最高。可见,适宜浓度的乙烯利处理能够在基本不影响产量的前提下提高工业大麻花叶的CBD含量与单株CBD总产量,在生产上具有兼顾含量与产量的应用潜力。
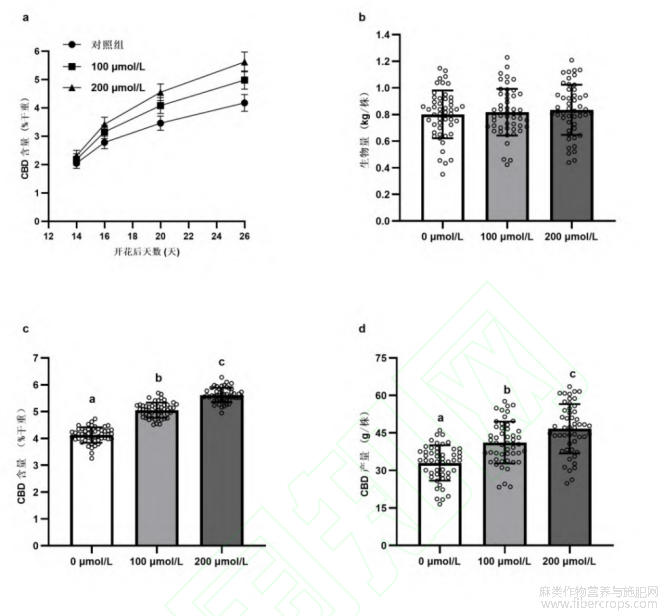
注:(a)花后14、16、20、26d花头CBD含量(%DW)动态,CK(0μmol/L)、100μmol/L、200μmol/L处理,均值±SD;(b)单株花叶生物量(kg/株);(c)收获期花头CBD含量(%DW);(d)单株CBD产量(g/株)=同株生物量×含量。每处理n=50,柱为均值±SD、散点为各单株,字母标号差异表示所有组间的多重比较结果,P<0.05。
图2 乙烯利对工业大麻DMG245花头CBD含量、花叶生物量及单株CBD产量的影响
2.3 转录组测序质量分析
本试验选取温室栽培的3组乙烯利浓度(0、100、200μmol/L)喷施处理的工业大麻花头,3个浓度3个时期(处理初、中、后期),并各取3组生物学重复,共27个测序样品。对27个样品的真核有参转录组(RNA-seq)分析,共获得167.03 Gb Clean Data,每个样品的Clean Data均达到5.72Gb,Q30碱基百分比在92.08%及以上。分别将各样品的Clean Reads与指定的参考基因组(Cannabis_sativa.cs10.genome.fa)进行序列比对,比对效率从87.17%到91.61%不等。表明测序数据质量良好,可用于后续分析。
2.4 差异基因表达分析
使用DESeq2软件进行差异基因表达分析。在差异表达基因检测过程中,将|Fold Change|≥2且P adjust-value<0.05作为筛选标准。根据取样时期将27个转录组样品(设9组)分三个差异分组(F2-A、F2-B、F2-C,F4-A、F4-B、F4-C和F6-A、F6-B、F6-C),分别调查不同乙烯利浓度喷施情况下处理初(F2)、中(F4)、后(F6)期工业大麻花头差异表达基因(Differentially Expressed Genes, DEGs)。
对工业大麻处理后三个时期的6个对比组差异表达基因进行统计,如图3所示,处理初、中、后期不同浓度处理情况下均为200μmol/L浓度乙烯利处理的差异表达基因数目多于100μmol/L浓度处理,且处理初期的差异表达基因数量多于处理中期和后期,处理后期100μmol/L浓度处理的工业大麻差异表达基因最少,仅31个。处理初期200μmol/L浓度乙烯利处理的差异表达基因数目最多,达322个,且上调基因也最多,为232个。
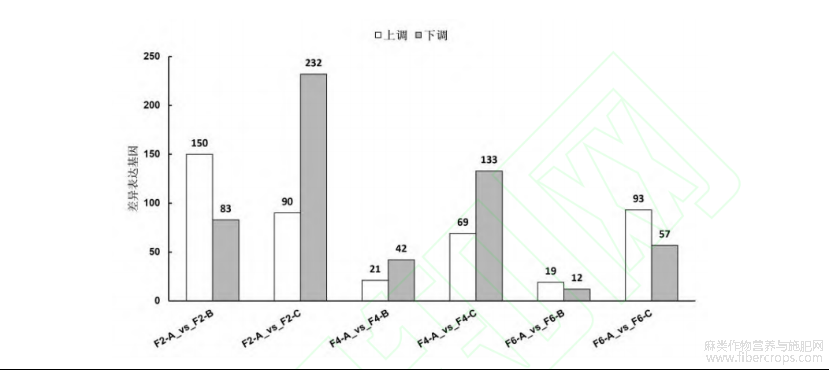
图3 工业大麻处理后三个时期的6个对比组差异表达基因
对乙烯喷施处理后随着开花时间的推进差异表达基因变化情况进行统计,绘制韦恩(Venn)图,在处理初期至处理中期(F2-F4)、处理中期至处理后期(F4-F6)两个阶段中,F2-F4阶段差异基因远多于F4-F6,共有3665个,其中上调1628个,下调2037个。从Venn图中可看出,处理初期至处理中期三个对比组上调 DEGs取交集后仅有5个(图4a),而下调DEGs取交集后共有245个(图4b)。此次转录组测序各比对组所得差异基因总数为4729个。
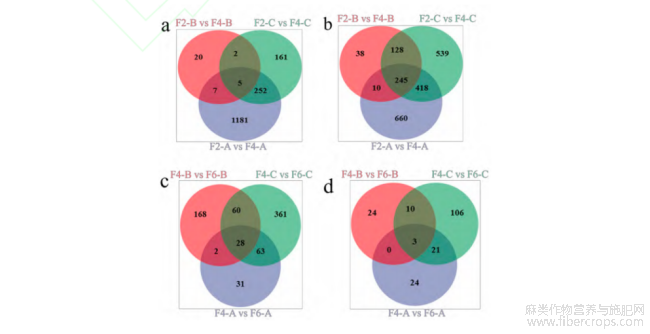
注:(a)(c)为上调差异表达基因,(b)(d)为下调差异表达基因。
图4 花后不同时期差异表达基因韦恩图
2.5 大麻素合成途径相关差异基因分析
研究发现乙烯利处理组相较于对照组CBD含量上升,为研究乙烯利调控大麻素合成的机理,对次级代谢过程中大麻素合成相关的差异表达基因进行进一步分析。
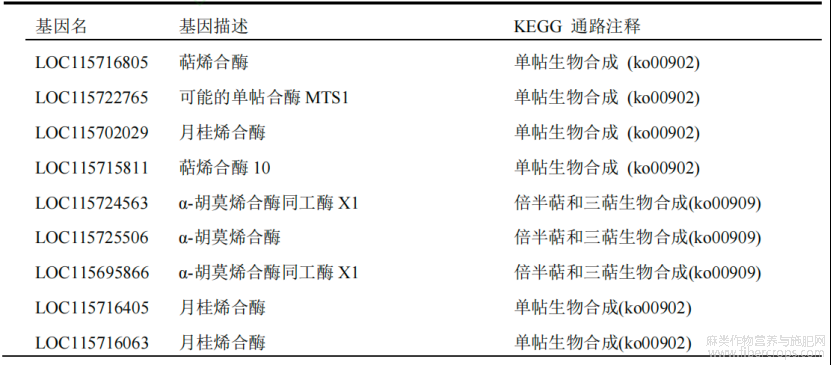
在萜合酶活性(GO:0010333)GO term中富集到44个基因,以FDR<0.5,| Fold Change|≥2为筛选阈值筛选出15个差异基因,与对照组相比,LOC115702029、LOC115716805、LOC115716806三个基因在乙烯利处理初期表达量均显著上调,且在取样的各时期其表达量均高于对照组。5个基因(LOC115701179、LOC115716063、LOC115716405、LOC115716805、LOC115722765)在F4-CvsF6-C 对比组中显著上调,一个(LOC115715915)在F4-B vs F6-B中显著上调,而在 F4-A vs F6-A中6个基因均为非差异表达基因。这些萜合酶可能受乙烯信号的影响,上调表达从而增加萜类物质的合成。
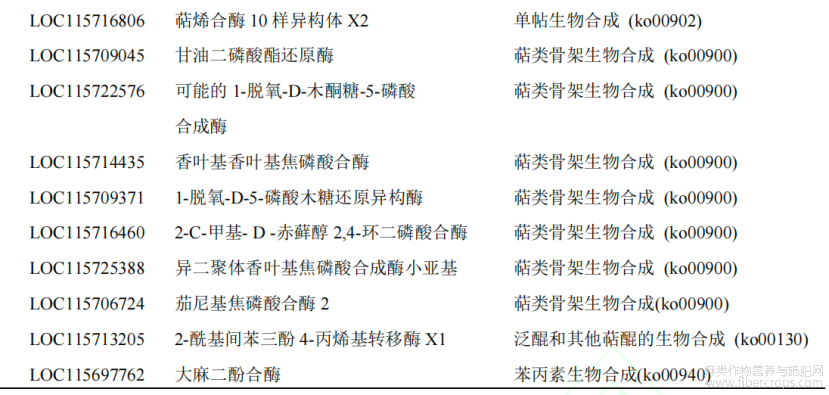
萜类骨架生物合成通路(Terpenoid backbone biosynthesis)的13个差异基因,多在开花后期的表达量显著高于初期。其中3个高表达差异基因LOC115709045(香叶基香叶基二磷酸还原酶)、LOC115714435(香叶基香叶基焦磷酸合酶)、LOC115722576(1-脱氧-D-木酮糖-5-磷酸合酶),平均FPKM大于50,且均为萜类前体物质合成途径的关键基因。大麻素合成途径中,CBGAS(大麻酚酸合酶)是一种芳香基原转移酶,也叫异戊二烯转移酶,负责将橄榄酸转化为大麻酚酸(CBGA),大麻素的直接前体,这是大麻素生物合成途径的第三步。转录组数据中发现了多个CBGAS基因,LOC115713215、LOC115713205、LOC115713171、LOC115713185,多为非差异表达基因,但LOC115713205在200μmol/L乙烯处理组中,先显著下调,再显著上调,上调倍数达4倍,最终F6时处理组仍然高于对照组,LOC115713215基因的表达量也在处理后期在乙烯处理组中明显高于对照组。大麻素氧化环化酶负责将CBGA转化为最终的大麻素THCA、CBDA、CBCA,是大麻素生物合成途径的最后一步[9]。其中的CBDAS(LOC115697762)大麻二酚酸合酶基因,是大麻二酚酸CBDA的氧化环化酶基因,该基因在处理中期至后期阶段200μmol/L处理组中显著上调,且在处理后期乙烯处理组中该基因的表达量均高于对照组。上述主要差异基因见表2。
表2 萜类合成通路主要差异基因
2.6 植物激素信号转导途径对外源乙烯利的响应
为挖掘乙烯调控大麻素等次生代谢产物合成的相关基因,差异表达基因分布集中的植物激素信号转导途径尤其值得关注。
通过KEGG富集分析筛选得出,乙烯利处理后(不含只有对照的三个分组)与植物激素信号转导途径的差异基因共有96个,涉及植物激素信号转导(Plant hormone signal transduction)、MAPK信号途径-植物(MAPK signaling pathway - plant)、昼夜节律-植物(Circadian rhythm-plant)和植物-病原互作(Plant-pathogen interaction)4个pathway。其中96个差异基因均参与了植物信号转导途径,23个基因参与了MAPK信号途径-植物,12个基因参与了植物-病原互作,4个基因参与了昼夜节律-植物(图5)。
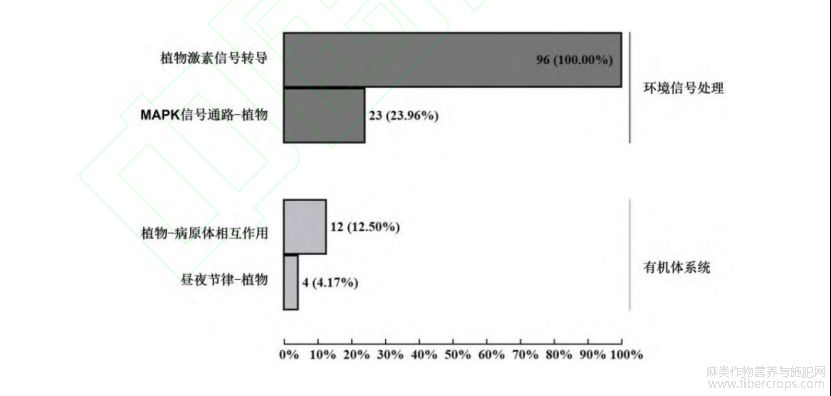
注:深色代表环境信号处理,浅色代表有机体系统。
图5 植物激素信号转导途径KEGG分类图
2.7 工业大麻响应乙烯处理的转录因子
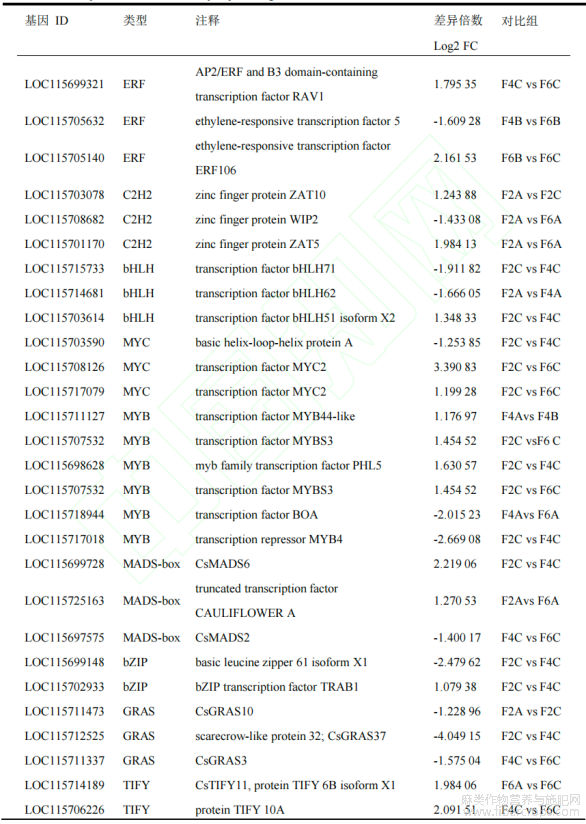
通常情况下,植物激素和其他信号分子都需依赖于特定的转录因子与下游目标基因的启动子区域结合,以此对植物的生理过程进行转录层面的调节,激素信号转导途径中也富集到了一些转录因子。此外,已经有研究表明,大麻素合成受发育进程的调控,转录组数据中发现很多萜烯合酶的表达随开花时间的推进而上调,这些合成酶基因很可能也是受到了转录调控因子的协同作用。因此,需要继续对转录组测序结果进行转录因子数据分析。经过富集分析共注释到248个转录因子家族基因,包括GRAS、AP2/ERF、MADS-box、TIFY、C2H2、bHLH、MYC、bZIP、WRAS、LBD和MYB等,主要差异基因见表3。
表3 转录因子差异表达基因

3 讨论与结论
工业大麻中丰富的萜、酚等化合物是花叶具有重要经济价值的主要原因,尤其是其中的CBD,对人类有极大的医疗、保健价值,一直备受关注。工业大麻中大麻素的合成过程极为复杂,涉及多种代谢途径且具有复杂的基因调控网络。乙烯作为一种重要的植物激素,对植物的生长发育具有重要影响。常博文[10]发现乙烯利可以促进长春花中药用成分异胡豆苷和长春碱的合成,转录组测出长春花中与萜类吲哚生物碱合成相关的基因中32个基因上调表达,35个基因下调表达。朱洁等[11]发现乙烯利处理可以提高生姜根茎中活性氧代谢相关酶的活性,并促进酚类物质和木质素的积累,从而促进生姜的愈伤过程。
本研究对两种浓度(100、200μmol/L)乙烯利浓度处理的花期工业大麻花头取样进行高通量测序,通过分析比对不同浓度、处理后不同时期工业大麻基因表达变化,对差异基因进行富集分析及联系其相关代谢通路,解析乙烯调控工业大麻中大麻素合成的机理并挖掘相关重要基因。
转录组测序差异基因结果显示,在处理初期、中期、后期三个时期,200μmol/L浓度处理的差异基因数目均多于100μmol/L处理组,推测与工业大麻对较高浓度乙烯利的转录响应更强有关。处理初期的差异基因明显多于中、后期,可能是由于处理初期植株对外源乙烯利较为敏感,而到后期第6次处理,植株对外源乙烯利产生了一定的适应性,响应程度有所下降。
在处理后不同阶段的差异基因中,仍表现为200μmol/L浓度处理的差异基因数量多于100μmol/L处理,且均为处理初期至中期阶段的差异基因数量多于处理中期至处理后期阶段。上下调基因数量变化与各时期差异基因变化一致,为处理初期至中期阶段下调的基因数量多于上调基因数量,处理中期至后期则上调基因数量多于下调基因数量。这些阶段的差异基因展示了乙烯利处理对工业大麻的持续影响。并且随着开花时间的推进,乙烯利处理组差异基因的变化情况与对照组相比具有明显区别,表示乙烯利处理对工业大麻基因表达造成了较大影响。
大麻素的直接前体物质是CBGAS,转录组数据分析发现CBGAS基因LOC115713205在200μmol/L乙烯处理组中,先显著下调,再显著上调,上调倍数达4倍,至后期时表达量仍然高于对照组,注释为编码CBGAS的另一个等位基因LOC115713215的表达量也在处理后期时在乙烯处理组中明显高于对照组。虽然LOC115713205和LOC115713215均编码CBGAS,两个等位基因在编码区存在多个位点的SNP,两者在氨基酸序列上也存在差异。该酶涉及泛醌和其他萜醌生物合成(ko00130)pathway,且该pathway与萜类骨架合成通路联系,CBGAS在萜类物质合成途径中。同pathway的反式肉桂酸4-单加氧酶(LOC115719463)基因表达变化与CBGAS类似,且该基因还涉及苯丙素生物合成通路(ko00940);黄酮类化合物生物合成(ko00941)两个大麻素合成相关的通路。在处理中期至后期阶段200μmol/L浓度处理组(ko00940)中所有差异基因均为上调,(ko00941)终产物合成的基因下调,其余差异基因上调。此外在苯丙素生物合成通路(ko00940)筛选到CBDAS(大麻二酚酸合酶),该基因在乙烯处理组中也表现为上调。据此推测,乙烯信号可能影响了相关代谢流的分配,这或许与处理后CBD含量的提高有关,但其具体机制仍有待进一步验证。
在萜合酶活性(GO:0010333)GO term中富集到的一些差异表达基因也表现出在乙烯处理组尤其是200μmol/L处理组中显著上调的现象,这些萜合酶基因也与萜类物质的合成紧密相关,其表达量的显著变化可能是由外源乙烯信号诱导的转录因子调控相关。转录因子调控关键酶基因使得次生代谢产物合成增加的研究很多,如将黄花蒿中的AaMYB1过表达,能激活青蒿素生物合成途径多个关键酶尤其是紫穗槐二烯合成酶和紫穗槐二烯氧化酶编码基因的表达,从而增加青蒿素的合成[12]。此外,黄花蒿MYB的另一转录因子AaBPF1也具有同样功能[13]。
植物激素调控对植物的次生代谢具有重大影响,植物激素信号转导(Plant hormone signal transduction)是KEGG显著富集的一个代谢途径,在该途径共富集到96个差异表达基因,涉及生长素、水杨酸、赤霉素、脱落酸、细胞分裂素、茉莉酸及乙烯等不同的激素信号途径。在这些信号途径中,发现除了编码其中关键成分的相关基因有显著差异表达外,还有许多转录因子参与其中显著差异表达,直接参与激素信号转导途径中关键成分的转录因子有ERF、bZIP、bHLH、MYB、TGA等,除了这些,在差异表达基因中还发现了多种其他类转录因子,如Dof、MADS-box、GRAS、C2H2、TIFY、LBD、WRKY等,这些转录因子可能协同激素信号参与工业大麻萜类化合物的合成调控。乙烯响应因子(ERF)受乙烯信号影响,可能通过调控植物次生代谢物质相关酶基因的表达水平调控植物的次生代谢物合成,如三萜皂苷[14]、丹参酮[15]、大麻素[16]、单萜吲哚类生物碱[17]、花色苷[18]等。茉莉酸(JA)在植物激素信号转导中占重要地位,被认为是核心信号[19],该途径连接了单萜生物合成(Monoterpenoid biosynthesis)吲哚生物碱生物合成(Indole alkaloid bisyntesis)通路,参与该信号通路的TIFY等转录因子在乙烯诱导大麻素合成中具有重要作用。WRKY转录因子表达可促进外源乙烯诱导的天然橡胶的生物合成[20]。
已有报道乙烯在不同植物中通过作用于MYB转录因子家族而调控下游基因的表达。如玫瑰中的R2R3-MYB转录因子RhMYB108是乙烯和茉莉酸信号的受体,可以靶向和增强一系列衰老相关基因的表达,以此来启动和调节花瓣的衰老[21]。草莓中乙烯反应因子FaERF#9与FaMYB98的ERF-MYB转录复合体通过激活醌氧化还原酶启动子来促进草莓主要香气物质呋喃酮的生物合成[22]。枇杷中的乙烯反应因子EjERF39与MYB形成协同激活复合物,能够激活木质素合成基因的启动子,以此调控枇杷果实在低温下的木质化[23]。Liu等[16]发现大麻中的CsMYB1(LOC115711127)转录因子能够激活CBDAS的启动子,并且可能是THCAS表达的负向调控因子,而本研究转录组数据中,在乙烯处理中期时100μmol/L处理组中CsMYB1表达量显著上调于对照,而后至处理后期阶段,100μmol/L处理组中CsMYB1表达量又显著下调,该表达趋势与乙烯反应因子ERF5(LOC115705632)基因一致,预测ERF5作用于CsMYB1转录因子协同调控CBDAS的表达,从而促进CBD的合成。转录组分析鉴定出来的这些基因还需深入研究,通过酵母杂交、蛋白互作、基因编辑、转基因等方法确定其具体功能和调控方式。
4 结论
本研究对乙烯利处理花期工业大麻进行了CBD含量测定,促进了对乙烯调控大麻素合成过程分子机理的了解,通过转录组技术对乙烯调控大麻素合成的关键候选基因进行挖掘,为进一步了解大麻素合成调控及栽培过程中施用乙烯利提高工业大麻CBD含量机理打下基础,同时为创制工业大麻优良新品种提供了基因资源。
参考文献
[1] Jeong C S, Chakrabarty D, Hahn E J, et al. Effects of oxygen, carbon dioxide and ethylene on growth and bioactive compound production in bioreactor culture of ginseng adventitious roots[J]. Biochemical Engineering Journal, 2006, 27(3): 252-263.
[2] Li Y, Lu Y E, Li L L, et al. Impairment of hormone pathways results in a general disturbance of fruit primary metabolism in tomato[J]. Food Chemistry, 2019, 274: 170-179.
[3] Xu L L, Yue Q Y, Bian F E, et al. Melatonin enhances phenolics accumulation partially via ethylene signaling and resulted in high antioxidant capacity in grape berries[J]. Frontiers in Plant Science, 2017, 8: 1426.
[4] Kovalchuk I, Pellino M, Rigault P, et al. The genomics of Cannabis and its close relatives[J]. Annual Review of Plant Biology, 2020, 71: 713-739.
[5] 张利晨,王延庆,郭丽萍.工业大麻:一株命运跌宕起伏的植物[J].黑龙江粮食,2021(1):31-33.
[6] 陈璇,杨明,郭鸿彦.大麻植物中大麻素成分研究进展[J].植物学报,2011,46(2):197-205.
[7] Mansouri H, Salari F, Asrar Z, et al. Effects of ethephon on terpenoids in Cannabis sativa L. in vegetative stage[J]. Journal of Essential Oil Bearing Plants, 2016, 19(1): 94-102.
[8] Toth J A, Stack G M, Cala A R, et al. Development and validation of genetic markers for sex and cannabinoid chemotype in Cannabis sativa L[J]. GCB Bioenergy, 2020, 12(3): 213-222.
[9] Bakel H V, Stout J M, Cote A G, et al. The draft genome and transcriptome of Cannabis sativa[J]. Genome Biology, 2011, 12(10): R102.
[10] 常博文.外源乙烯调控长春花萜类吲哚生物碱合成的代谢和转录组分析[D].哈尔滨:东北林业大学,2016.
[11] 朱洁,李灿婴,孙磊,等.乙烯利处理通过调节抗氧化酶活性和次生代谢产物的积累促进生姜根茎愈伤[J].食品科学,2022,43(5):244-251.
[12] Matías-Hernández L, Jiang W M, Yang K, et al. AaMYB1 and its orthologue AtMYB61 affect terpene metabolism and trichome development in Artemisia annua and Arabidopsis thaliana[J]. The Plant Journal, 2017, 90(3): 520-534.
[13]马嘉伟,王宇婷,严振宁,等.青蒿MYB类转录因子AaBPF1的克隆及功能研究[J].生物技术进展,2019,9(1):35-45.
[14] Deng B, Huang Z J, Ge F, et al. An AP2/ERF family transcription factor PnERF1 raised the biosynthesis of saponins in Panax notoginseng[J]. Journal of Plant Growth Regulation, 2017, 36(3): 691-701.
[15] Ji A J, Luo H M, Xu Z C, et al. Genome-wide identification of the AP2/ERF gene family involved in active constituent biosynthesis in Salvia miltiorrhiza[J]. The Plant Genome, 2016, 9(2): plantgenome2015.08.0077.
[16] Liu Y Y, Zhu P P, Cai S, et al. Three novel transcription factors involved in cannabinoid biosynthesis in Cannabis sativa L[J]. Plant Molecular Biology, 2021, 106(1): 49-65.
[17] Pan Q F, Wang C Y, Xiong Z W, et al. CrERF5, an AP2/ERF transcription factor, positively regulates the biosynthesis of bisindole alkaloids and their precursors in Catharanthus roseus[J]. Frontiers in Plant Science, 2019, 10: 931.
[18] Mo R L, Han G M, Zhu Z X, et al. The ethylene response factor ERF5 regulates anthocyanin biosynthesis in ‘Zijin’ mulberry fruits by interacting with MYBA and F3H genes[J]. International Journal of Molecular Sciences, 2022, 23(14): 7615.
[19] 代红洋,柏旭,李晓岗,等.植物激素在三萜类化合物生物合成中的作用及调控机制研究进展[J].中草药,2021,52(20):6391-6402.
[20] Qu L, Li H L, Guo D, et al. HbWRKY27, a group IIe WRKY transcription factor, positively regulates HbFPS1 expression in Hevea brasiliensis[J]. Scientific Reports, 2020, 10: 20639.
[21] Zhang S, Zhao Q C, Zeng D X, et al. RhMYB108, an R2R3-MYB transcription factor, is involved in ethylene- and JA-induced petal senescence in rose plants[J]. Horticulture Research, 2019, 6: 131.
[22] Zhang Y Y, Yin X R, Xiao Y W, et al. An ethylene response factor-myb transcription complex regulates furaneol biosynthesis by activating quinone oxidoreductase expression in strawberry[J]. Plant Physiology, 2018, 178(1): 189-201.
[23] Zhang J, Yin X R, Li H, et al. ETHYLENE RESPONSE FACTOR39-MYB8 complex regulates low-temperature-induced lignification of loquat fruit[J]. Journal of Experimental Botany, 2020, 71(10): 3172-3184.
文章摘自:李岩,黎丽,粟建光,匡琛,陈继康,刘永蓓,张小雨.乙烯利调控工业大麻CBD合成与积累的系统响应及转录调控机制[J/OL].中国麻业科学.
